基础研究

丹参酚酸B通过高迁移率族蛋白1抑制氧化应激诱导的内皮细胞焦亡

龚明艳 李敏 郭军

请尊重版权,未经授权禁止下载

引用格式: 龚明艳,李敏,郭军. 丹参酚酸B通过高迁移率族蛋白1抑制氧化应激诱导的内皮细胞焦亡[J/OL]. 中华心血管病杂志(网络版),2022,5:e1000112(2022‑05‑30). http://www.cvjc.org.cn/index.php/Column/columncon/article_id/290. DOI:10.3760/cma.j.cn116031.2022.1000112.

复制引文
发布日期: 2022/05/30    浏览量: 5917 次

登录后方可查看全文,无账号可以前往注册

版权归中华医学会所有。
未经授权,不得转载、摘编本刊视频资料。
除非特别声明,本刊刊出的所有视频及资料不代表中华医学会和本刊编委会的观点。
目录
视频
全文导视
00:44
视频
丹参酚酸B通过高迁移率族蛋白1抑制氧化应激诱导的内皮细胞焦亡
12:19
音频
丹参酚酸B通过高迁移率族蛋白1抑制氧化应激诱导的内皮细胞焦亡
12:06

引言


传统中药治疗心血管疾病在我国已有很长的历史,临床上对于抑制动脉粥样硬化早期病变及进展具有较大的潜力[1]。丹参为唇行科植物,被广泛应用于心脑血管疾病。丹参的水溶性成分主要为丹参酚酸类物质,其中丹参酚酸B(Salvianolic acid B,Sal B)为四聚体结构的咖啡酸衍生物,分子式C36H30O16,相对分子质量为718.61。尽管现代药理学研究表明Sal B对内皮损伤具有很大的保护作用,但其保护作用的潜在机制尚未完全明确,大多数研究报道Sal B通过增强细胞自噬[2]、减少细胞凋亡和促进血管生成[3]等保护内皮细胞。细胞焦亡是一种最新发现炎症性的细胞程序性死亡,然而,Sal B对氧化应激过程中细胞焦亡的研究甚少,且具体分子机制也不明确。

最初认为细胞焦亡仅存在于单核细胞或巨噬细胞中,但最近的研究表明,细胞焦亡也可出现在内皮细胞中[4],并在动脉粥样硬化中也能检测到细胞焦亡,其中炎性小体发挥着重要作用[5]。在经典焦亡通路中,核苷酸结合寡聚化结构域样受体蛋白(nucleotide‑binding oligomerization domain‑like receptor protein 3,NLRP3)炎性小体与衔接蛋白凋亡相关微粒蛋白发生寡聚反应,募集胱天蛋白酶(caspase)‑1形成多蛋白复合物,诱导caspase蛋白成熟,继而激活并裂解底物消皮素D(gasdermin D,GSDMD),使细胞膜穿孔,炎性细胞因子分泌至细胞外导致细胞死亡[6]。高迁移率族蛋白1(high mobility group box‑1 protein,HMGB1)是一种重要的危险相关分子模式分子,细胞外HMGB1可通过激活其高亲和力受体——晚期糖化终产物受体(receptor of advanced glycation endproducts,RAGE)介导多种细胞损伤以及应激状态反应,参与多种疾病病理的发展。既往研究表明,HMGB1在内皮功能障碍、缺血性损伤、心肌梗死和动脉粥样硬化中均发挥着重要作用[7]。因此,本研究在检测内皮细胞氧化应激过程中HMGB1表达水平变化的基础上,拟探究Sal B保护内皮细胞减少氧化应激导致细胞焦亡的作用及潜在分子机制。为了进一步研究HMGB1在氧化应激损伤的具体作用机制,我们通过HMGB1小干扰核糖核酸(small interfering RNA,siRNA)干预细胞内HMGB1表达,深入探讨HMGB1与细胞焦亡的关系。

对象与方法


一、试剂和仪器
二甲基亚砜(Sigma 公司,美国),hoechst 33342(Hoechst AG公司,德国),胰蛋白酶(Gibco 公司,美国),荧光探针DCFH‑DA(碧云天生物技术有限公司,中国),三磷酸腺苷(adenosine triphosphate,ATP)检测试剂盒(碧云天生物技术有限公司,中国),JC‑1荧光探针(碧云天生物技术有限公司,中国),膜联蛋白V‑异硫氰酸荧光素(annexin V‑fluorescein isothiocyanate,annexin V‑FITC)/碘化丙啶(propidine iodide,PI)凋亡检测试剂盒(江苏凯基生物技术股份有限公司),Trizol RNA 提取试剂(Invitrogen生命技术公司,美国),反转录酶试剂盒(Takara Bio公司,日本),SYBR Green(ThermoFisher公司,美国),放射免疫沉淀(radio immunoprecipitation assay,RIPA)裂解液(碧云天生物技术有限公司,中国),NLRP3抗体、凋亡相关斑点样蛋白(apoptosis‑associated speck‑like protein containing a caspase recruitment domain,ASC)、caspase‑1、白细胞介素‑1β(interleukin‑1β,IL‑1β)(Cell Signaling Technology公司,美国),甘油醛‑3‑磷酸脱氢酶(glyceraldehyde‑3‑phosphate dehydrogenase,GAPDH)一抗、GSDMD(Abcom公司,英国)、辣根过氧化物酶标记的山羊抗兔二抗(Cell Signaling Technology公司,美国),BCA蛋白检测试剂盒(碧云天生物技术有限公司,中国),ECL化学发光试剂盒(Millipore公司,美国),HMGB1 siRNA、NC siRNA(产品编号 siG081027160139 si‑h‑HMGB1_001,广州锐博生物技术有限公司),ECM(sciencell公司,美国),Sal B单体由暨南大学药学院江仁望教授实验室制备完成。

多功能酶标仪(BioTek公司,美国),实时PCR仪(ThermoFisher公司,美国),荧光倒置显微镜(Leica仪器有限公司,德国),光学倒置显微镜(Olympus公司,日本),全自动凝胶成像系统(通用电气公司,美国),电泳设备(天能集团,中国),CFX96 touch 荧光定量PCR仪(伯乐生命医学产品有限公司,美国),HVE‑50高压灭菌锅(Hirayama公司,日本)。


二、细胞培养及分组
实验中使用的脐带标本已通过暨南大学附属第一医院伦理委员会审批(批件号:KY‑2021‑050)。提取弃用新生儿脐带,用胰酶分离并提取人脐静脉内皮细胞(human umbilical vein endothelial cells,HUVEC),将细胞培养于内皮细胞专用培养基,置于 37 ℃、5%CO2培养箱中,每2 d更换1次培养液,实验中使用第4~6代HUVEC。将HUVEC按1×10⁶/孔接种于6孔板,每组设3复孔。(1)对照组:予1‰DMSO处理;(2)过氧化氢(hydrogen peroxide,H2O2)组:予200 μmol/L H2O2处理;(3)H2O2+Sal B组:10 μmol/L Sal B预处理24 h后再予200 μmol/L H2O2处理,本实验中用到的Sal B的浓度分别为5、10、20、40、80 μmol/L;(4)Sal B组:10 μmol/L Sal B预处理24 h后再予1‰DMSO处理;(5)H2O2+siRNA NC组:siRNA NC预处理24 h后再予200 μmol/L H2O2处理;(6)H2O2+HMGB1 siRNA组:HMGB1 siRNA预处理24 h后再予200 μmol/L H2O2处理;(7)H2O2+Sal B+HMGB1 siRNA组:10 μmol/L Sal B及HMGB1 siRNA预处理24 h后再予200 μmol/L H2O2处理。


三、实验方法
1. 免疫荧光:制成细胞爬片,清洗并固定后,滴加正常山羊血清封闭,加入一抗于冰箱内4 ℃过夜;对照组以磷酸盐缓冲溶液(polybutylene succinate,PBS)代替一抗。过夜后清洗加荧光二抗,室温湿孵1 h,滴加4',6‑二脒基‑2‑苯基吲哚(4',6‑diamidino‑2‑phenylindole,DAPI)进行细胞核染色,用含抗荧光淬灭剂的封片液封片,然后在荧光显微镜下观察采集图像。

2.透射电镜:细胞固定后依次浸泡于50%乙醇脱水15~20 min,浸泡于70%乙醇脱水15~20 min,浸泡于 90%乙醇脱水15~20 min,浸泡于90%乙醇与90%丙酮(比例1∶1)脱水15~20 min,浸泡于90%丙酮脱水15~20 min,均于冰箱内4 ℃进行,在室温下浸泡于100%丙酮脱水15~20 min;使用纯丙酮+包埋液(比例2∶1)室温包埋3~4 h,纯丙酮+包埋液(比例1∶2)室温包埋过夜,纯包埋液37 ℃包埋 2~3 h ;依次放于37 ℃烘箱内过夜,45 ℃烘箱内12 h,60 ℃烘箱内24 h;使用LKB‑1型超薄切片机切片为50~60 nm,加3%醋酸铀‑柠檬酸铅双染色,透射电镜观察拍片。

3.流式细胞术:收集细胞后离心5 min(1 600 转/min,离心半径10 cm),弃上清后加入100 μl结合缓冲液混匀;先加入2.5 μl annexin V‑FITC,再加入2.5 μl PI,室温避光15 min;加入200 μl缓冲液小心混匀,转移到流式管上机。

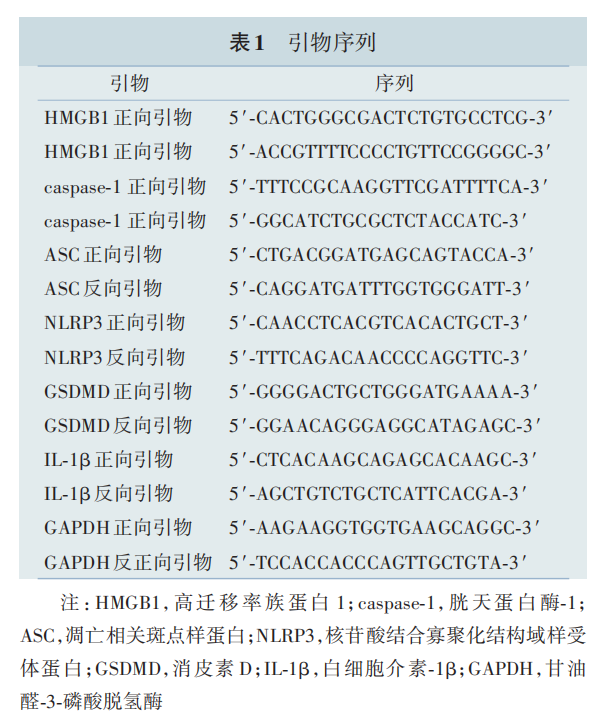
4.实时定量聚合酶链反应(real‑time quantitative polymerase chain reaction,RT⁃qPCR)检测:检测取各组HUVEC,胰蛋白酶消化后,采用Trizol试剂提取总RNA,按照反转录试剂盒说明书进行反转录获取互补脱氧核糖核酸(complementary DNA,cDNA),检测引物序列见表1。以GAPDH为内参。RT‑qPCR 反应条件:95 ℃预变性30 s;95 ℃变性5 s,60 ℃退火30 s,循环45次,于60 ℃时收集数据。目的基因mRNA相对表达量以2-ΔΔCt 表示,ΔCt=Ct目的基因-CtGAPDH,ΔΔCt=ΔCt目的基因-ΔCt对照组。

5.蛋白质印迹(Western blot,WB)法检测细胞中蛋白质水平:将HUVEC按1×10⁶/孔接种于6孔板,次日细胞融合度达到90%时,PBS清洗,分组和处理同上,收集各组细胞,RIPA裂解液提取总蛋白,冰上裂解30 min,离心15 min(3 000 转/min,离心半径10 cm),吸取上清液留存。采用BCA试剂盒测定并调整蛋白浓度,加入十二烷基硫酸钠聚丙烯酰胺凝胶电泳蛋白上样缓冲液,99 ℃煮10 min使蛋白充分变性。采用聚丙烯酰胺凝胶电泳分离蛋白,将分离后的蛋白转移至聚偏氟乙烯膜上,封闭液封闭1 h,洗涤缓冲液洗膜3次,每次5 min。加入NLRP3、GSDMD、ASC、caspase‑1、IL‑1β、GAPDH一抗,4 ℃孵育过夜,加入山羊抗兔二抗室温孵育1 h,化学发光系统ECL试剂盒显影成像。

6.细胞转染:按照广州锐博生物技术有限公司转染试剂的说明书操作。产品以冻干粉的形式,用无酶水配制成20 μmol/L储存液分装保存于-20 ℃或-80 ℃,避免反复冻融;细胞接种于6孔板培养孔中,转染时细胞密度为30%~50%;用120 μl 1×riboFECT™ 化学纯(chemically pure,CP)缓冲液稀释5 μl上述siRNA 储存液,轻轻混匀,加入12 μl riboFECT™ CP Reagent混匀,室温孵育 0~15 min,将上述混合物加入细胞培养基中,再根据实验需要进行相应处理。


四、统计学分析
实验结果重复3次后取平均值,使用Graphpad Prism8软件分析实验结果。本实验数据以表示。两组数据间比较,如方差齐性并呈正态分布,选用非配对t检验进行两组间比较。P<0.05为差异有统计学意义。

结果


一、人脐静脉内皮细胞鉴定及细胞活性检测
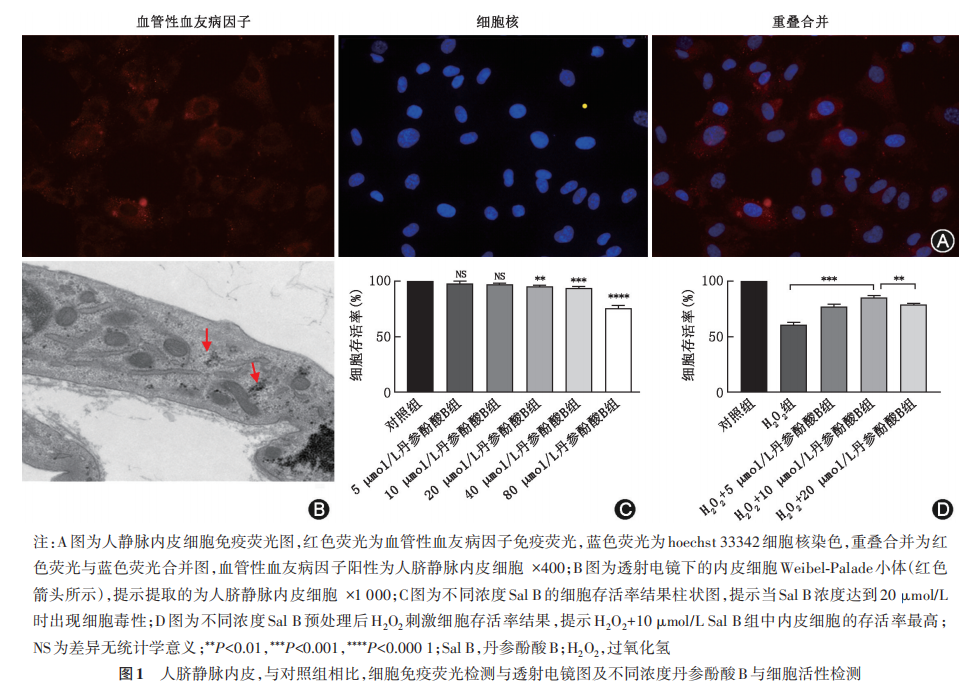
细胞免疫荧光视野内几乎所有细胞血管性血友病因子(von Willebrand factor,vWF)阳性(图1A),透射电镜下观察内皮细胞可见棒杆状Weibel‑Palade小体(Weibel‑Palade body,WPB)(图1B),表明提取的为HUVEC。实验表明,当Sal B浓度≤10 μmol/L时,其细胞存活率与对照组相比差异无统计学意义(100% vs. 97.00%±1.00%,P>0.05)。当Sal B浓度达到20 μmol/L时出现细胞毒性(100% vs. 95.0%±0.6%,P<0.01)(图1C),故实验中选取Sal B的浓度为10 μmol/L。实验中用不同浓度(5、10和20 μmol/L)Sal B预处理后再用200 μmol/L H2O2处理内皮细胞,使用细胞计数试剂8(Cell Counting Kit‑8,CCK8)检测其细胞活性。实验结果提示10 μmol/L和20 μmol/L浓度的Sal B预处理后能升高内皮细胞存活率(图1D),但20 μmol/L Sal B比10 μmol/L Sal B组细胞存活率降低(85.67%±1.50% vs. 79.00%±1.00%,P<0.01),故H2O2+10 μmol/L Sal B组中内皮细胞的存活率最高,与H2O2组对比,内皮细胞存活率明显升高(61.00%±1.70% vs. 85.67%±1.50%,P<0.000 1)。


二、丹参酚酸B对内皮细胞活性氧水平影响
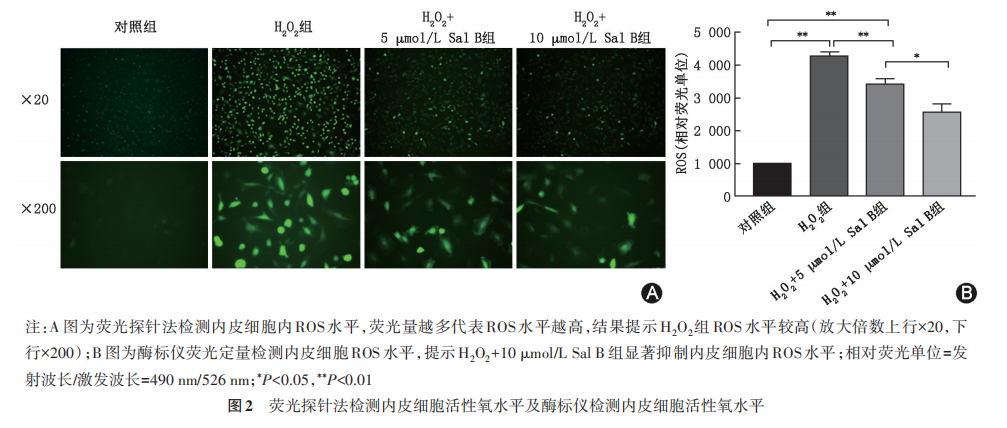
实验结果表明,对照组中几乎观察不到荧光,H2O2组中细胞内产生大量的荧光,说明活性氧(reactive oxygen species,ROS)水平较高(图2A)。与H2O2组相比,H2O2+5 μmol/L Sal B组视野中内皮细胞荧光有所减少,说明其具有抑制ROS的作用,且H2O2+10 μmol/L Sal B组中抑制ROS作用较明显(图2A)。通过酶标仪荧光定量结果表明,与对照组相比,H2O2组ROS水平明显升高[相对荧光单位(1 000.0±116.7) vs. (4 280.0±121.7),P<0.001)]。Sal B可以抑制H2O2诱导内皮细胞内ROS产生,与H2O2组相比,H2O2+10 μmol/L Sal B组 [相对荧光单位(4 280.0±121.7) vs. (2 577.0±245.4),P<0.001)]比H2O2+5 μmol/L Sal B组 [相对荧光单位(4 280.0±121.7) vs. (3 413.0±168.0),P<0.01]作用更加明显(图2B)。


三、丹参酚酸B对内皮细胞线粒体膜电位影响
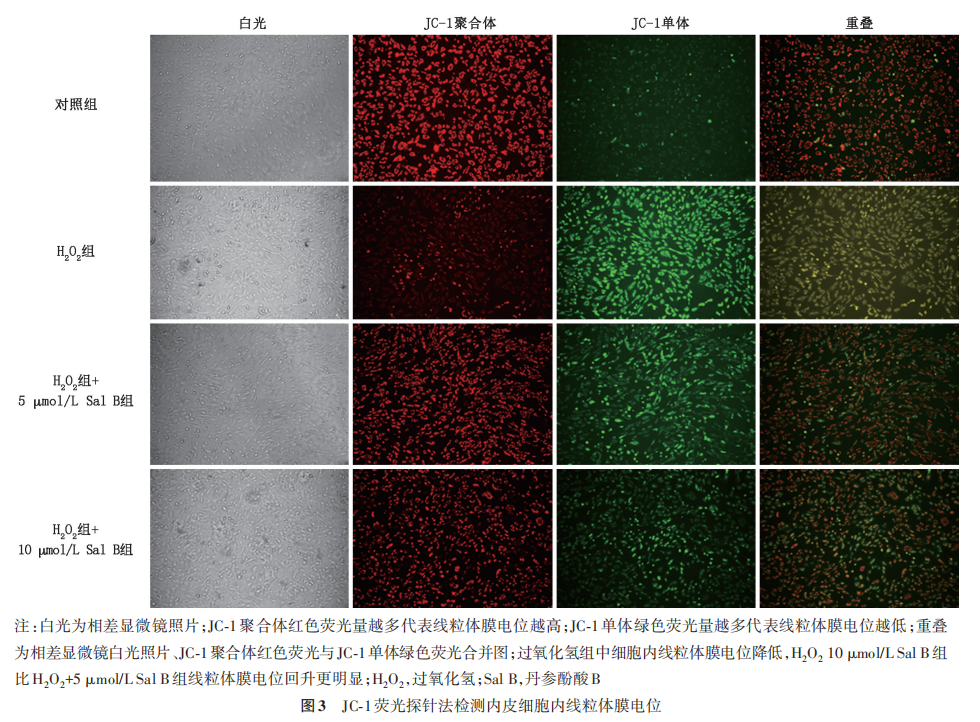
JC‑1荧光结果如图3所示,与对照组相比,H2O2组中内皮细胞的绿色荧光明显增加,表明线粒体膜电位降低。与H2O2组相比,H2O2+5 μmol/L Sal B组和H2O2+10 μ mol/L Sal B组中内皮细胞的线粒体膜电位有所回升,表明Sal B对内皮细胞的线粒体具有保护作用。


四、丹参酚酸B对细胞膜破损影响
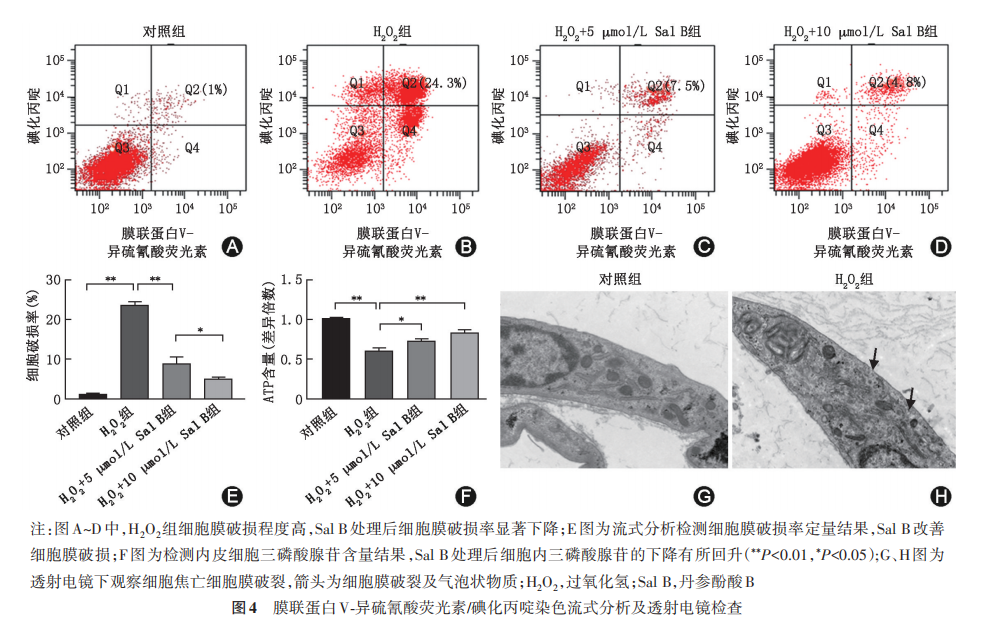
我们采用流式细胞技术鉴定细胞膜破损情况。结果如图4A~E所示,与对照组相比,H2O2组细胞破损程度升高[(23.65%±0.91%)vs.(1.10%±0.14%),P<0.001],Sal B预处理后,细胞膜破损率显著下降,且H2O2+10 μmol/L Sal B组[(23.65%±0.91%) vs. (5.05%±0.35%),P<0.001]比H2O2+5 μmol/L Sal B组[(23.65%±0.91%) vs. (8.75%±1.76%),P<0.001]对细胞膜破损改善更加明显(P<0.05)。通过ATP检测试剂盒检测细胞ATP含量,与对照组相比,H2O2组的内皮细胞中ATP含量明显下降[(1.01±0.01) vs. (0.605±0.030),P<0.01]。与H2O2组相比,H2O2+10 μmol/L Sal B组[(0.605±0.030) vs. (0.835±0.030),P<0.01]比H2O2+5 μmol/L Sal B组[(0.605±0.030) vs. (0.735±0.020),P<0.01]对细胞内ATP下降改善更加明显(图4F)。通过透射电镜可以观察细胞内的亚显微结构,对照组细胞的细胞膜及细胞器完整(图4G),H2O2组的内皮细胞可见胞质内细胞器结构不清晰,充满不均匀小泡,即焦亡小体,之后细胞膜上形成孔隙,细胞膜破裂,内容物流出(图4H)。


五、丹参酚酸B对细胞焦亡损伤的影响
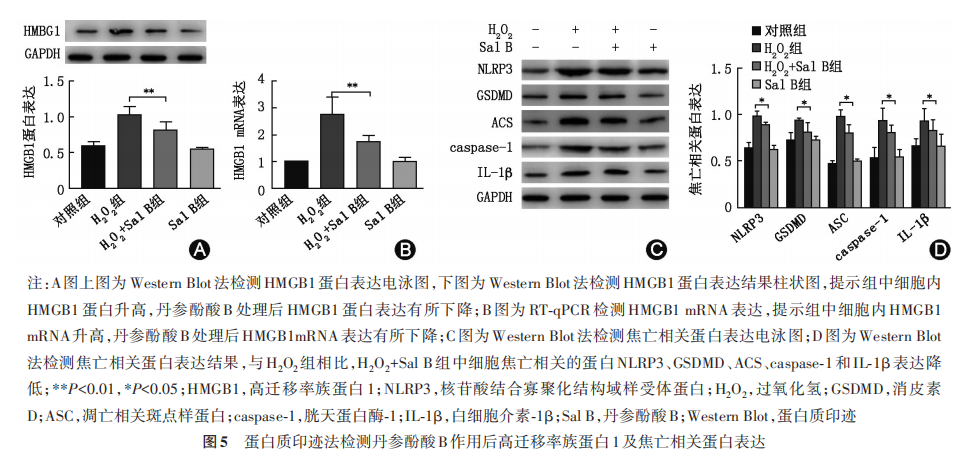
为了研究Sal B能否抑制HMGB1,故设定Sal B浓度均为10 μmol/L。实验结果如图5A、5B,与对照组相比,H2O2组内皮细胞内HMGB1 mRNA表达量[(1.00±0.00) vs.(2.75±0.63),P<0.001]及HMGB1蛋白浓度[(0.59±0.05) vs. (1.03±0.11),P<0.001]均升高, 而Sal B组与对照组相比细胞内HMGB1 mRNA表达量 [(1.00±0.11) vs. (1.00±0.14),P>0.05]与HMGB1蛋白浓度[(0.59±0.05) vs. (0.55±0.01),P>0.05]差异无统计学意义。与H2O2组相比,H2O2+Sal B组中内皮细胞HMGB1 mRNA表达量[(2.75±0.63) vs. (1.75±0.21),P<0.001]及HMGB1蛋白浓度[(1.03±0.11) vs. (0.81±0.11),P<0.001]均有所改善。

与对照组相比,H2O2刺激内皮细胞后,细胞内NLRP3[(0.65±0.04) vs. (0.98±0.05),P<0.001]、GSDMD[(0.73±0.07) vs. (0.94±0.01),P<0.001]、ACS[(0.48±0.02) vs. (0.98±0.07),P<0.05]、caspase‑1[(0.54±0.11) vs. (0.94±0.13),P<0.05]和IL‑1β[(0.66±0.07) vs. (0.94±0.13),P<0.05]蛋白水平升高。与H2O2组相比,H2O2+Sal B组中细胞焦亡相关的蛋白NLRP3[(0.98±0.05) vs. (0.89±0.02),P<0.05]、GSDMD[(0.94±0.01) vs. (0.81±0.09),P<0.05]、ACS[(0.98±0.07) vs. (0.80±0.08),P<0.05]、caspase‑1[(0.94±0.13) vs. (0.81±0.08),P<0.05]和IL‑1β[(0.94±0.13) vs. (0.83±0.11),P<0.05]表达有所降低,表明Sal B预处理能改善H2O2诱导的细胞焦亡(图5C、D)。


六、敲低高迁移率族蛋白1对内皮细胞焦亡影响
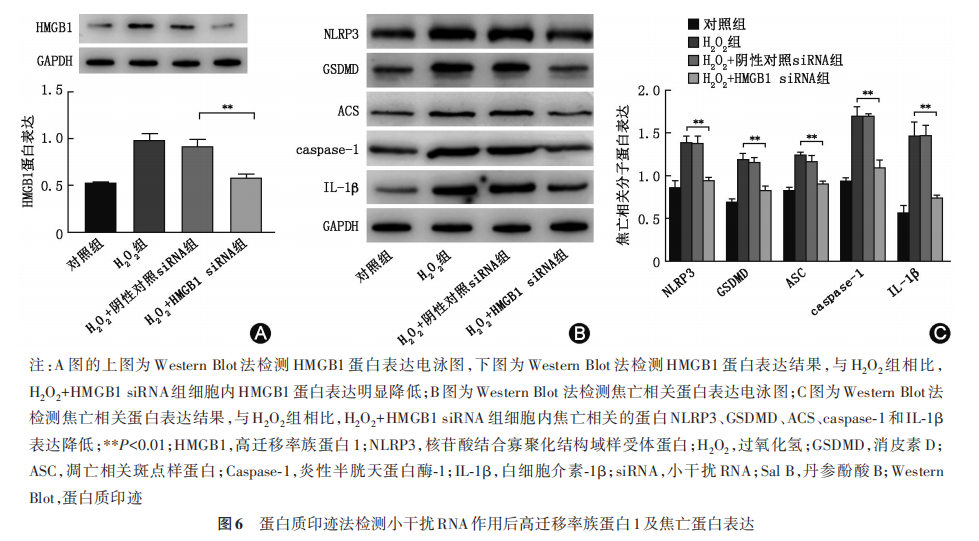
如图6A所示,与H2O2+siRNA NC组相比,H2O2+HMGB1 siRNA组的内皮细胞内HMGB1蛋白表达明显减少[(0.98±0.07) vs. (0.58±0.04),P<0.001]。进一步检测焦亡相关分子情况,结果显示敲低HMGB1减少H2O2对内皮细胞的焦亡损伤中NLRP3[(1.396±0.07) vs. (1.17±0.15),P<0.01]、GSDMD[(1.19±0.07) vs. (0.84±0.04),P<0.01]、ACS[(1.25±0.02) vs. (0.91±0.02),P<0.01]、caspase‑1[(1.70±0.10) vs. (1.10±0.09),P<0.01]、IL‑1β[(1.47±0.16) vs. (0.75±0.02),P<0.01]的表达(图6B、C)。


七、敲低高迁移率族蛋白1联合丹参酚酸B对内皮细胞焦亡影响
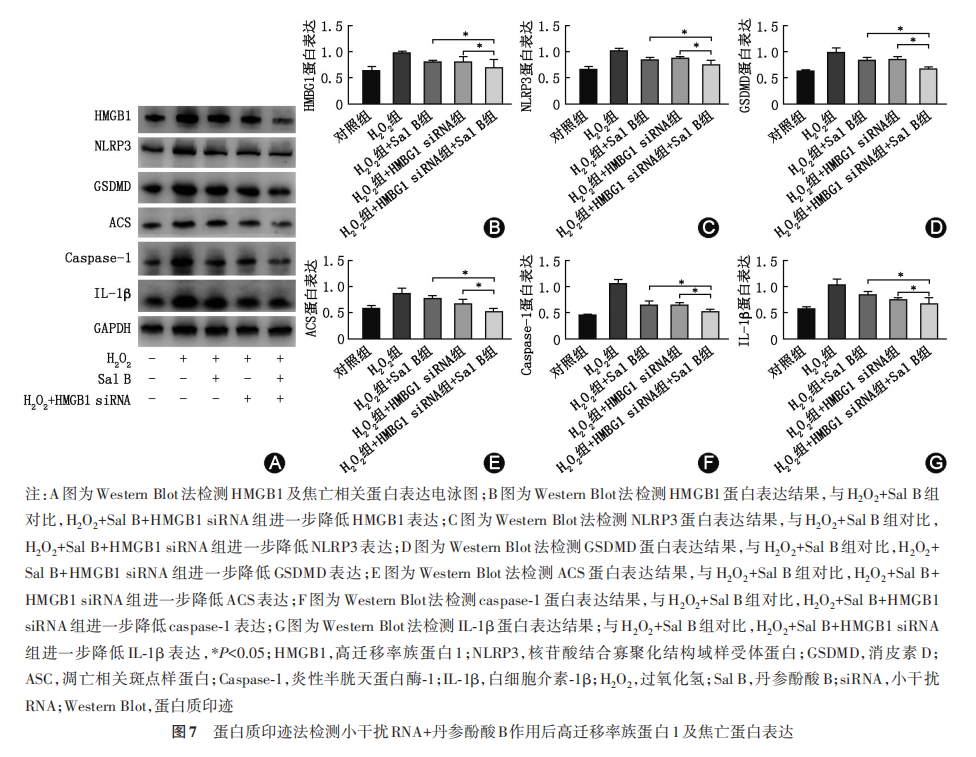
Sal B和HMGB1 siRNA对H2O2诱导内皮损伤均有保护作用(图7A)。与H2O2+Sal B组对比,H2O2+Sal B+HMGB1 siRNA组进一步降低HMGB1表达[(0.82±0.01) vs. (0.71±0.14),P<0.05] (图7B)及细胞焦亡过程中NLRP3激活[(0.85±0.04) vs. (0.76±0.07),P<0.05] (图7C),进一步减少GSDMD[(0.85±0.05) vs. (0.69±0.02),P<0.05](图7D)、ASC[(0.78±0.04) vs. (0.53±0.05),P<0.05](图7E)、caspase‑1[(0.85±0.04) vs. (0.76±0.07),P<0.05](图7F)、IL‑1β[(0.65±0.07) vs. (0.52±0.04),P<0.05](图7G)等的释放,Sal B比HMGB1 siRNA的保护作用相对较强,且两者联合后有叠加保护作用,说明Sal B至少部分通过HMGB1发挥抗焦亡作用。

讨论


在本研究中,我们通过HUVEC培养研究Sal B对内皮细胞氧化应激损伤的影响,我们的研究结果表明Sal B可减轻内皮细胞损伤,抑制HMGB1是预防氧化应激状态下NLRP3炎性小体激活导致内皮细胞损伤进展潜在的治疗靶标,为内皮细胞损伤的潜在治疗机制提供依据。

既往研究表明,在动脉粥样硬化的早期,氧化应激刺激的内皮细胞可能释放黏附分子、促炎细胞因子和趋化因子以吸引单核细胞和其他炎性细胞,并增加平滑肌细胞的增殖和迁移进入动脉内膜,从而导致血管扩张功能障碍和损伤[8]。氧化应激不仅导致内皮功能障碍,而且是冠状动脉粥样硬化进展的主要因素[9]。目前大多研究表明,内皮细胞损伤通路主要为细胞凋亡,对于细胞焦亡相关研究较少。细胞焦亡是炎性细胞死亡的一种类型,是炎性半胱天冬酶介导的GSDMD裂解,引起细胞快速炎症反应导致细胞焦亡直接促进疾病的发展。细胞焦亡经典途径主要通过激活NLRP3炎症小体募集了共同的衔接蛋白ASC来激活caspase‑1,造成包括GSDMD剪切和多聚化导致细胞穿孔,并促进IL‑1β和IL‑18蛋白质成熟和分泌,进而引起细胞死亡[10]。

WPB是血管内皮细胞一种分泌性细胞器,为0.1 μm粗、3 μm长的杆状小体,由单层膜包绕,内含有多种生物活性分子,vWF是其中组成分子,其多聚体以管状形式在WPB中规则排列,促进WPB独特的棒状形态的形成。在我们的实验中,提取内皮细胞在透射电镜下观察可见WPB,细胞免疫荧光视野内几乎所有细胞vWF均呈阳性,提取为内皮细胞。内皮细胞受到氧化应激后细胞存活率下降,大量ROS生成,线粒体膜电位下降和ATP生成减低,电镜下观察在细胞质中有大量不均匀小泡,即焦亡小体,之后细胞膜上会形成孔隙造成细胞膜破损。PI是一种核酸染料,它不能透过完整的细胞膜,但由于焦亡细胞中细胞膜破损允许小分子量的分子通过,PI易于进入细胞内而将细胞核染红。因此焦亡细胞PI和Annexin V染色均为阳性,可与早期凋亡Annexin V阳性PI阴性相鉴别[11]。而通过流式染色鉴定氧化应激状态下PI/Annexin V双阳细胞明显增多,细胞膜破损增多,同时激活NLRP3炎性小体及caspase‑1,GSDMD‑N末端片段蛋白的表达显著增加,且伴随着IL‑1β炎症细胞因子的释放,表明氧化应激状态下发生细胞焦亡。有研究表明Sal B可以抑制 caspase‑1/GSDMD 介导的细胞焦亡[12],与我们研究结果一致,Sal B治疗可以改善内皮细胞损伤中细胞焦亡,本研究进一步研究Sal B改善内皮细胞损伤过程中细胞焦亡的具体机制。

目前研究表明,ROS是细胞焦亡发生过程中NLRP3炎性小体激活的先决条件[13],通过ROS促进硫氧还蛋白相互作用蛋白从硫氧还蛋白解离,并与NLRP3结合,从而促进炎性小体的形成[13]。同样在我们的实验研究中,内皮细胞氧化应激状态下细胞内ROS明显升高,促进NLRP3炎性小体激活,当予Sal B处理后,ROS降低时NLRP3炎性小体也相应减少,表明氧化应激过程中ROS升高导致NLRP3炎性小体激活。既往研究表明,高剂量的ROS可促进HMGB1核外转移,HMGB1蛋白是一种与染色质结合的核蛋白,在几乎所有类型的真核细胞中都是进化保守且组成性表达[14],是调节氧化应激的细胞和信号传导途径的组成部分[15]。高剂量ROS导致病理性HMGB1亚型的产生可介导内皮细胞促炎性应答,并诱导细胞凋亡、自噬或细胞焦亡等[16],与我们的研究结果一致,氧化应激下线粒体障碍产生大量ROS,促进HMGB1核外转移,细胞内HMGB1表达水平升高。

氧化应激过程中病理状态下 HMGB1升高对于内皮细胞损伤作用,是否与调控 NLRP3 炎症小体活性抑制焦亡反应有关?研究表明HMGB1与toll样受体9(toll like receptor 9,TLR9)或RAGE依赖性方式结合各种DNA序列后触发NLRP3和黑素瘤缺乏因子2(absent in melanoma 2,AIM2)炎性小体的激活[17]。研究表明,HMGB1诱导的巨噬细胞焦亡通过RAGE/dynamin/cathepsin B信号传导起作用,然后触发了焦亡小体的形成和caspase‑1介导的细胞焦亡[18],同样的研究也表明HMGB1通过信号传导激活内皮细胞内依赖NLRP3导致的细胞焦亡[19]。这些研究提示HMGB1通过不同信号通路诱导焦磷酸化导致细胞焦亡。在我们的研究中Sal B处理后内皮细胞HMGB1减少,且NLRP3炎性小体激活减少,表明Sal B抑制氧化应激诱导HMGB1及NLRP3炎性小体激活的细胞焦亡。而敲低内皮细胞内HMGB1后,NLRP3炎性小体激活减少,caspase‑1及GSDMD‑N末端片段蛋白的表达显著减少,且伴随着IL‑1β炎症细胞因子的释放减少,内皮细胞焦亡减轻,表明HMGB1信号通路在一定程度上能介导NLRP3炎性小体激活,当Sal B治疗敲低HMGB1内皮细胞时,其抑制细胞焦亡的作用有所加强,进一步表明Sal B至少部分通过降低HMGB1抑制氧化应激诱导NLRP3炎性小体激活的细胞焦亡。

总之,我们的结果表明,氧化应激条件下,内皮细胞内HMGB1升高,促进NLRP3炎性小体生成,导致细胞焦亡。而敲低细胞内HMGB1与Sal B均可降低氧化应激下HMGB1,进而减少NLRP3炎性小体,对内皮细胞有一定的保护作用。因此Sal B通过降低内皮细胞氧化应激水平,减少细胞焦亡从而保护内皮细胞,这种保护作用至少部分通过降低内皮细胞内HMGB1表达水平来实现。显然Sal B治疗内皮细胞损伤还可以通过其他机制介导,这还需要进一步研究。本研究证实内皮细胞损伤中细胞焦亡存在,阐明Sal B可以降低细胞焦亡,同时也揭示Sal B治疗内皮细胞损伤的新机制,为进一步临床研究提供依据。
  • 作者: 龚明艳    李敏    郭军   

  • 作者单位: 暨南大学附属第一医院心血管内科   

  • 通信作者: 郭军,Email:dr.guojun@163.com

  • 关键词: 丹参酚;HMGB1蛋白质;NLR家族, 热蛋白结构域包含蛋白3;细胞焦亡

  • DOI: 10.3760/cma.j.cn116031.2022.1000112

  • 基金项目: 国家自然科学基金(81673635);广东省自然科学基金(2022A1515011133)

  • 利益冲突: 无

  • 收稿日期: 2021-11-02

  • 录用日期: 2022-03-24

  • 本文编辑: 史红

  • 摘要中文

    目的

    探讨丹参酚酸B(Salvianolic acid B,Sal B)在内皮细胞氧化应激损伤中的保护作用。

    研究对象

    提取原代人脐静脉内皮细胞(human umbilical vein endothelial cells,HUVECs),将获取的细胞分成7个实验组:(1)对照组,(2)过氧化氢(hydrogen peroxide,H2O2)组,(3)H2O2+Sal B组,(4)Sal B组,(5)H2O2+小干扰核糖核酸(small interfering RNA,siRNA)阴性对照(negative control,NC)组,(6)H2O2+高迁移率族蛋白1(high mobility group box‑1 protein,HMGB1)siRNA组,(7)H2O2+Sal B+HMGB1 siRNA组。

    干预措施

    (1)对照组:予1‰二甲基亚砜(dimethyl sulfoxide,DMSO)处理;(2)H2O2组:予200 μmol/L H2O2处理;(3)H2O2+Sal B组:10 μmol/L Sal B预处理24 h后再予200 μmol/L H2O2处理;(4)Sal B组:10 μmol/L Sal B预处理24 h后再予1‰DMSO处理;(5)H2O2+siRNA NC组:siRNA NC预处理24 h后再予200 μmol/L H2O2处理;(6)H2O2+HMGB1 siRNA组:HMGB1 siRNA预处理24 h后再予200 μmol/L H2O2处理;(7)H2O2+Sal B+HMGB1 siRNA组:10 μmol/L Sal B及HMGB1 siRNA预处理24 h后再予200 μmol/L H2O2处理。

    观测指标及测量方法

    采用荧光探针法检测细胞内活性氧(reactive oxygen species,ROS)水平、细胞线粒体膜电位及三磷酸腺苷(adenosine triphosphate,ATP)水平;采用透射电镜观察细胞结构变化及采用Annexin V/PI染色进行流式分析检测细胞膜破损情况;使用蛋白质印迹(Western blot,WB)法检测氧化应激状态下细胞焦亡相关蛋白核苷酸结合寡聚化结构域样受体蛋白(nucleotide‑binding oligomerization domain‑like receptor protein 3,NLRP3)、消皮素D(gasdermin D,GSDMD)、凋亡相关斑点样蛋白(apoptosis‑associated speck‑like protein containing a caspase recruitment domain,ASC)、胱天蛋白酶‑1(caspase‑1)、白细胞介素‑1β(interleukin‑1β,IL‑1β)蛋白;利用siRNA瞬时敲低细胞中HMGB1,观察有无Sal B预处理细胞中焦亡相关分子NLRP3、GSDMD、ASC、caspase‑1、IL‑1β 蛋白表达情况。实验结果使用Graphpad Prism8 软件进行统计分析并作图,结果以显示,组间对比采用独立样本t检验,P<0.05为差异有统计学意义。

    结果

    与H2O2组对比,通过细胞计数试剂8(cell counting kit‑8,CCK8)检测显示H2O2+10 μmol/L Sal B组增加内皮细胞的存活率(P<0.000 1),降低细胞内ROS水平(相对荧光单位P<0.000 1),维持细胞内线粒体膜电位及ATP生成(P<0.01),膜联蛋白V/碘化丙啶染色流式显示细胞膜破损程度减轻(P<0.001),降低细胞内HMGB1信使RNA(messenger RNA,mRNA) 表达量(P<0.01)及HMGB1蛋白浓度(P<0.01),同时抑制细胞内焦亡相关分子NLRP3(P<0.05)、GSDMD(P<0.05)、ACS(P<0.05)、caspase‑1 (P<0.05)、IL‑1β(P<0.05)表达。使用siRNA瞬时敲低细胞内HMGB1,与H2O2+Sal B组对比,H2O2+Sal B+HMGB1 siRNA组进一步降低HMGB1表达(P<0.05),同时抑制细胞焦亡过程中NLRP3激活(P<0.05),进一步减少GSDMD(P<0.05)、ASC(P<0.05)、caspase‑1(P<0.05)、IL‑1β(P<0.05)等的释放,表明敲低HMGB1可减轻内皮细胞的焦亡损伤,同时增加Sal B对内皮细胞的保护作用。

    结论

    Sal B通过降低ROS水平抑制HMGB1,维持线粒体内氧化还原稳态,抑制内皮细胞中NLRP3炎性小体形成,改善内皮细胞焦亡。

    摘要英文

    Objective

    To explore the protective effects of salvianolic acid B (Sal B) on oxidative stress injury in endothelial cells.

    Subjects

    Primary umbilical vein endothelial cells (human umbilical vein endothelial cells, HUVECs) were extracted and assigned to 7 experimental groups: (1) control group; (2) hydrogen peroxide (H2O2) group; (3) H2O2+Sal B group; (4) Sal B+H2O2+small interfering RNA (siRNA) negative control (NC) group; (5) H2O2+high mobility group box‑1 (HMGB1) siRNA group; (6) H2O2+Sal B+HMGB1 siRNA group.

    Interventions

    (1) Control group: treated with 1‰ dimethyl sulfoxide (DMSO); (2) H2O2 group: treated with 200 μmol/L H2O2; (3) H2O2+Sal B group: pretreated with 10 μmol/L Sal B for 24 h, followed by 200 μmol/L H2O2 treatment; (4) Sal B group: 10 μmol/L Sal B pretreated for 24 h, followed by 1‰ DMSO treatment; (5) H2O2+siRNA NC group: siRNA pretreated for 24 h, followed by 200 μmol/L H2O2 treatment; (6) H2O2+HMGB1 siRNA group: HMGB1 siRNA pretreated for 24 h, followed by 200 μmol/L H2O2 treatment; (7) H2O2+Sal B+HMGB1 siRNA group: 10 μmol/L Sal B and HMGB1 siRNA pretreated for 24 h, followed by 200 μmol/L H2O2 treatment.

    Main Outcomes and Measurements

    A fluorescence probe was used to measure intracellular reactive oxygen species (ROS) levels, mitochondrial membrane potential, and ATP levels. Changes in cell structure were observed using transmission electron microscopy, and cell membrane damage was examined using Annexin V/PI staining with flow cytometry. Western blot analysis was used to examine the expression of pyroptosis‑related proteins, namely, nucleotide‑binding oligomerization domain‑like receptor protein 3 (NLRP3) under oxidative stress, gasdermin D (GSDMD), apoptosis‑associated speck‑like protein containing a caspase recruitment domain (ASC), inflammatory caspase‑1, and interleukin‑1β (IL‑1β). HMGB1 was transiently knocked down in cells using siRNA, and the protein expression of NLRP3, GSDMD, ASC, caspase‑1, and IL‑1β was detected in Sal B‑pretreated cells. Experimental results were statistically analyzed, and histograms were plotted using the GraphPad Prism 8 software. Results are presented Mean±SD. Comparisons between groups were performed using the independent sample t‑test. Statistical significance was set at P<0.05.

    Results

    Compared with the H2O2 group, the H2O2+10 μmol/L Sal B group presented an increased endothelial cell survival rate (P<0.000 1) and decreased intracellular ROS levels (relative fluorescence units; P<0.000 1), while maintaining mitochondrial membrane potential and ATP production in cells (P<0.01), as determined using the Cell Counting Kit‑8 (CCK8) assay. Based on Annexin V/PI staining, the H2O2+10 μmol/L Sal B group showed an improvement in the degree of cell membrane damage (P<0.001), reduced mRNA and protein expression of HMGB1 (P<0.001 and P<0.001, respectively), and downregulation of intracellular pyroptosis‑related molecules [NLRP3 (P<0.05), GSDMD (P<0.05), ACS (P<0.05), caspase‑1 (P<0.05), and IL‑1β (P<0.05)]when compared with the H2O2 group. Following the siRNA‑mediated transient knockdown of intracellular HMGB1, the expression of HMGB1 was further reduced (P<0.05), and NLRP3 was suppressed during pyroptosis (P<0.05) in the H2O2+Sal B+HMGB1 siRNA group when compared with the H2O2+Sal B group. This further impaired the release of GSDMD (P<0.05), ASC (P<0.05), caspase‑1 (P<0.05), and IL‑1β (P<0.05), indicating that HMGB1 knockdown alleviated pyroptotic injury of endothelial cells, thereby increasing the effects of Sal B on endothelial cell pyroptosis.

    Conclusions

    Sal B inhibits the expression of HMGB1 by reducing endothelial ROS levels, maintaining mitochondrial redox homeostasis, inhibiting NLRP3 inflammasome formation, and ameliorating pyroptosis, thereby engaging in a protective role.


    本研究主要材料与器材

    无

    参考文献

    [1] Wang C, Niimi M, Watanabe T, et al. Treatment of atherosclerosis by traditional Chinese medicine: Questions and quandaries[J]. Atherosclerosis, 2018,277:136‑144. DOI: 10.1016/j.atherosclerosis.2018.08.039.
    [2] Gao S, Li S, Li Q, et al. Protective effects of salvianolic acid B against hydrogen peroxide‑induced apoptosis of human umbilical vein endothelial cells and underlying mechanisms[J]. Int J Mol Med, 2019,44(2):457‑468. DOI: 10.3892/ijmm.2019.4227.
    [3] Yang K, Luo Y, Lu S, et al. Salvianolic acid B and ginsenoside RE synergistically protect against ox‑LDL‑induced endothelial apoptosis through the antioxidative and antiinflammatory mechanisms[J]. Front Pharmacol, 2018,9:662. DOI: 10.3389/fphar.2018.00662.
    [4] Jia C, Zhang J, Chen H, et al. Endothelial cell pyroptosis plays an important role in Kawasaki disease via HMGB1/RAGE/cathespin B signaling pathway and NLRP3 inflammasome activation[J]. Cell Death Dis, 2019,10(10):778. DOI: 10.1038/s41419‑019‑2021‑3.
    [5] Zeng C, Wang R, Tan H. Role of Pyroptosis in cardiovascular diseases and its therapeutic implications[J]. Int J Biol Sci, 2019,15(7):1345‑1357. DOI: 10.7150/ijbs.33568.
    [6] Shi J, Gao W, Shao F. Pyroptosis: gasdermin‑mediated programmed necrotic cell death[J]. Trends Biochem Sci, 2017,42(4):245‑254. DOI: 10.1016/j.tibs.2016.10.004.
    [7] Skrha J Jr, Kalousová M, Svarcová J, et al. Relationship of soluble RAGE and RAGE ligands HMGB1 and EN‑RAGE to endothelial dysfunction in type 1 and type 2 diabetes mellitus[J]. Exp Clin Endocrinol Diabetes, 2012,120(5):277‑281. DOI: 10.1055/s‑0031‑1283161.
    [8] Yin Y, Li X, Sha X, et al. Early hyperlipidemia promotes endothelial activation via a caspase‑1‑sirtuin 1 pathway[J]. Arterioscler Thromb Vasc Biol, 2015,35(4):804‑816. DOI: 10.1161/ATVBAHA.115.305282.
    [9] Heitzer T, Schlinzig T, Krohn K, et al. Endothelial dysfunction, oxidative stress, and risk of cardiovascular events in patients with coronary artery disease[J]. Circulation, 2001,104(22):2673‑2678. DOI: 10.1161/hc4601.099485.
    [10] Bianchi ME, Manfredi AA. High‑mobility group box 1 (HMGB1) protein at the crossroads between innate and adaptive immunity[J]. Immunol Rev, 2007,220:35‑46. DOI: 10.1111/j.1600‑065X.2007.00574.x.
    [11] Vande Walle L, Lamkanfi M. Pyroptosis[J]. Curr Biol, 2016,26(13):R568‑R572. DOI: 10.1016/j.cub.2016.02.019.
    [12] Pang Y, Zhang PC, Lu RR, et al. Andrade‑oliveira salvianolic acid B modulates caspase‑1‑mediated pyroptosis in renal ischemia‑reperfusion injury via Nrf2 pathway[J]. Front Pharmacol, 2020,11:541426. DOI: 10.3389/fphar.2020. 541426.
    [13] Zhou R, Tardivel A, Thorens B, et al. Thioredoxin‑ interacting protein links oxidative stress to inflammasome activation[J]. Nat Immunol, 2010,11(2):136‑140. DOI: 10.1038/ni.1831.
    [14] Lotze MT, Tracey KJ. High‑mobility group box 1 protein (HMGB1): nuclear weapon in the immune arsenal[J]. Nat Rev Immunol, 2005,5(4):331‑342. DOI: 10.1038/nri1594.
    [15] Yu Y, Tang D, Kang R. Oxidative stress‑mediated HMGB1 biology[J]. Front Physiol, 2015,6:93. DOI: 10.3389/fphys.2015.00093.
    [16] Raucci A, Di Maggio S, Scavello F, et al. The Janus face of HMGB1 in heart disease: a necessary update[J]. Cell Mol Life Sci, 2019,76(2):211‑229. DOI: 10.1007/s00018‑018‑2930‑9.
    [17] Tian J, Avalos AM, Mao SY, et al. Toll‑like receptor 9‑dependent activation by DNA‑containing immune complexes is mediated by HMGB1 and RAGE[J]. Nat Immunol, 2007,8(5):487‑496. DOI: 10.1038/ni1457.
    [18] Xu J, Jiang Y, Wang J, et al. Macrophage endocytosis of high‑mobility group box 1 triggers pyroptosis[J]. Cell Death Differ, 2014,21(8):1229‑1239. DOI: 10.1038/cdd.2014.40.
    [19] Jia C, Zhang J, Chen H, et al. Endothelial cell pyroptosis plays an important role in Kawasaki disease via HMGB1/RAGE/cathespin B signaling pathway and NLRP3 inflammasome activation[J]. Cell Death Dis, 2019,10(10):778. DOI: 10.1038/s41419‑019‑2021‑3.
    无
    发表评论文明上网理性发言,请遵守互动礼仪
    您需要先 登录 后方可发表评论。
    • 全部评论
    • /
    • 我的评论
    • 最新
    • /
    • 最热